甲烷是仅次于二氧化碳的第二大温室气体,很多地方比如稻田、湿地、垃圾填埋场还有反刍动物都会排出大量甲烷,但是这些气体排除之后并没有全部进入大气,一部分被土壤还有沉积物中午微生物吃掉了,那么问题来了,到底是谁在吃?吃了多少?在什么条件下吃得多?
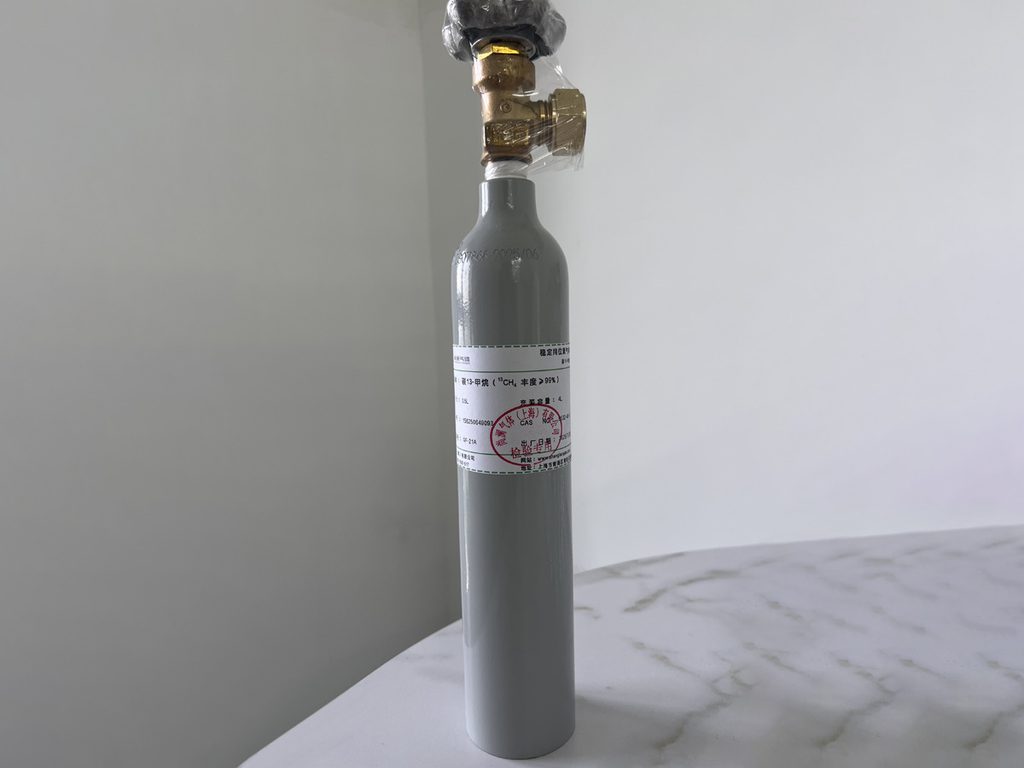
想要算明白这个账,研究者常用的工具里,就出现了一瓶不起眼的小钢瓶——碳13甲烷,化学式¹³CH₄。
一般甲烷是由98.9%的碳12甲烷加上0.1%的碳13甲烷组成,含量非常少,而我们尚澜气体的碳13甲烷的丰度能够达到99%,虽然性质和甲烷一模一样,但是通过质谱仪已检测,就能够明显看到吃进去的碳在谁那里,富集到了什么程度,一目了然。
有一个非常经典的实验,把稻田土、湿地泥、垃圾填埋场覆盖土或者湖泊沉积物装进密封血清瓶,顶空通入5%左右的¹³CH₄,在暗处培养几天到一周。结束后提取总DNA,做氯化铯密度梯度超离——被¹³C标记过的核酸密度更大,会沉到重层。把重层DNA拿去测序,富集出来的菌属,就是这片土壤里真正在活跃消耗甲烷的类群。
多年冻土带甲烷汇、红树林土壤、城市垃圾覆盖土里的甲烷氧化菌群落,很多就是靠这套DNA-SIP流程被鉴定出来的。如果再配合磷脂脂肪酸分析,测C16和C18支链脂肪酸里的¹³C丰度,还能进一步区分I型甲烷氧化菌和II型甲烷氧化菌谁占主导——国内亚热带农业生态研究所在稻田土壤的工作,就是用¹³C-PLFA锁定了I型菌在甲烷碳转化中的主体地位。
第二类是厌氧甲烷氧化,也就是AOM。过去以为甲烷只能在有氧条件下被氧化,后来发现甲烷在缺氧环境下被一类古菌(ANME)和伴生细菌耦合氧化,电子受体可以是硫酸盐、硝酸盐、亚硝酸盐,甚至铁、锰氧化物。做实验时把泥水除氧、充入氮气,注入¹³CH₄,再分别补加不同电子受体,最后检测¹³CO₂的生成速率——哪一组有标记碳释放,就说明哪条途径在起作用。泥炭地水位变化、城市湿地缺氧沉积层里NC10门细菌和ANME-2d的生态位分化,近年不少高影响力工作都是这套设计。
第三类是温室气体通量和碳汇定量。甲烷在土壤表层被氧化,一部分碳变成CO₂逸出,另一部分同化成微生物生物量,进入土壤有机碳库。用¹³CH₄培养后,测定土壤有机碳里的¹³C净增量(¹³C-SOC),就能把甲烷氧化驱动的固碳量算出来。
围垦稻田、滨海湿地、多年冻土区都做过这类测定,结果发现好氧甲烷氧化其实是一个被低估的土壤碳汇过程。再往上走一层,利用大气甲烷天然丰度δ¹³C的差异,还能反演全球甲烷来源结构:微生物源(湿地、稻田、反刍动物)偏轻,化石源(油气泄漏)偏重,生物质燃烧源又是另一个区间。
NOAA团队正是靠这条碳13线索判断,2007年以来大气甲烷快速回升主要来自微生物排放增长,而不是化石源。
从稻田土样到北极碳汇,从甲烷氧化菌的物种鉴定到全球大气甲烷收支,¹³CH₄这瓶气做的事情,本质上就是给看不见的碳流装上示踪剂,让微生物在显微镜和质谱图之间留下痕迹,一般而言1L小包装的气体就够一般的科研使用了。


